Présentation Biologie Mode de vie Infestation Nuisance Moyens de lutte
Auteur : François DROUET.
Photographies : voir crédits. Tous droits réservés.
Durée de la maturation de l'œuf
La description de l'œuf de Silba adipata McAlpine, assortie d'exemples d'observation d'œufs non éclos et d'enveloppes d'œufs vides (chorions), fait l'objet d'un chapitre spécifique. Un autre chapitre traite la maturation de l'œuf, avec notamment la présentation des organes reproducteurs femelles. Le présent chapitre regroupe les considérations relatives à la durée de la maturation de l'œuf, selon le plan suivant : observations de durée, faible proportion de femelles matures.
OBSERVATIONS DE DURÉE
OBSERVATIONS DE F. SILVESTRI
Selon les observations de Filippo SILVESTRI, en période d'été et pour des individus nourris à l'eau et au miel, la maturation des œufs de Silba adipata McAlpine s'effectue en une dizaine de jours. Référence : SILVESTRI F., 1917, Sulla Lonchaea aristella Beck. (Diptera : Lonchaeidae) dannosa alle infiorescenze e fruttescenze del caprifico e del fico, Bollettino del Laboratorio di Zoologia Agraria in Portici, vol.12, pp. 123 -146.
Le fait que l'auteur précise que la durée de maturation des œufs est celle observée pour des individus sous régime eau + miel nous assure qu'elle procède de dissections de mouches élevées en conditions de laboratoire, et non d'une simple estimation tirée de ses connaissances générales des diptères. Mais F. SILVESTRI ne fournit ni détails sur le mode opératoire, ni informations sur le nombre de femelles disséquées et sur les âges de sacrifice testés.
OBSERVATIONS DE DIAZ-DEL-CASTILLO R. ET AL.
En 2025, DIAZ-DEL-CASTILLO R. et al. ont publié dans la revue Insects un article relatif au développement sexuel de Silba adipata McAlpine. Référence : DIAZ-DEL-CASTILLO R., CÓRDOVA-GARCIA G., PÉREZ-STAPLES D., BIRKE A., WILLIAMS T., LASA R., 2025, Sexual Development of Silba adipata (Diptera: Lonchaeidae): Effects of Diet, Ultraviolet Light and Fig Latex, Insects 16, no. 5: 495.
Les auteurs ont étudié les durées de maturation de l'œuf de Silba adipata McAlpine sous quatre régimes alimentaires différents : sucre raffiné ; sucre raffiné + latex de figuier ; sucre raffiné + protéines hydrolysées ; sucre raffiné + protéines hydrolysées + latex de figuier. Dans les quatre cas, eau disponible à volonté. Conditions d'expérimentation : température 24 °C (+ ou - 1 °C), humidité relative 65 % (+ ou - 10 %), groupes de 10 à 15 femelles dans des cages d'élevage (23,5 x 13,5 x 13,5 cm).
Pour chacun des régimes, des échantillons (lots) de 8 à 15 femelles ont été sélectionnés aléatoirement dans huit cages différentes 3, 6, 9, 15, 21 et 27 jours après le début de l'expérience. Les mouches ont été sacrifiées à −20 °C, puis disséquées dans du sérum physiologique. Les auteurs indiquent que les ovocytes immatures apparaissent comme des petites sphères donnant à l'ovaire un aspect lobulaire, tandis que les ovocytes matures sont beaucoup plus gros et fusiformes. Ils précisent qu'ils ont considéré qu'une femelle est mature si elle présente au moins deux gros ovocytes (longueur > 800 μm) dans l'ovaire.
Pour les deux régimes à base de sucre seul ou de sucre + latex de figuier, aucune mouche femelle n'a développé d'ovocytes matures au cours des 27 jours de l'expérience. Voir ci-après photographies d'ovaires de femelles immatures (reproduction autorisée,
article sous licence Open Access).
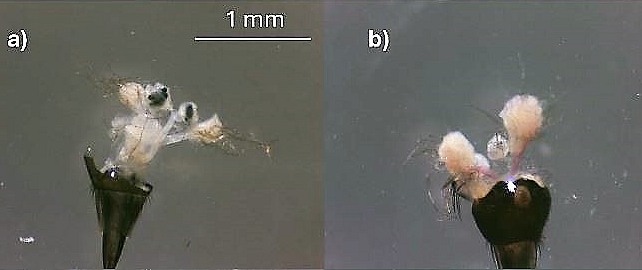
Silba adipata McAlpine : ovaires de femelles au stade immature.
(a = femelle âgée de 6 jours ; b = femelle âgée de 9 jours).
Crédit : DIAZ-DEL-CASTILLO R. et al. (Insects).
Pour les deux régimes comprenant des protéines hydrolysées (associées à du sucre ou à du sucre + latex de figuier), des femelles matures ont été trouvées seulement à partir de 15 jours de vie. Dans les lots de femelles sacrifiées à 3, 6 et 9 jours de vie, aucune femelle mature n'a été trouvée. Pour le régime
sucre + protéines hydrolysées, le pourcentage de femelles matures trouvées dans les lots de mouches sacrifiées à l'âge de 15 jours est de 8 %. Pour le régime
sucre + protéines hydrolysées + latex de figuier, ce pourcentage est de 20 %. Voir photographies ci-après (reproduction autorisée, article sous licence Open Access).
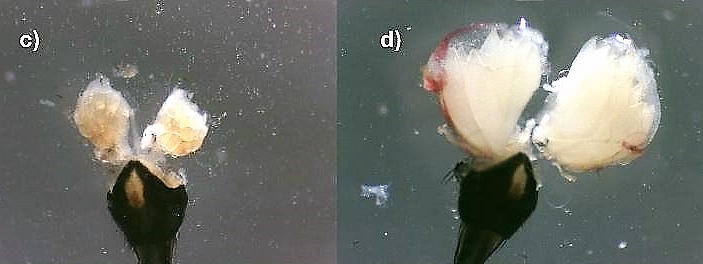
Silba adipata McAlpine : ovaires à l'âge de 15 jours (c = femelle immature ; d = femelle mature).
Crédit : DIAZ-DEL-CASTILLO R. et al. (Insects).
Pour le régime sucre + protéines hydrolysées, le pourcentage de femelles matures trouvées dans le lot de mouches sacrifiées à l'âge de 21 jours est de 44 %. Et celui des femelles matures trouvées dans le lot de mouches sacrifiées à l'âge de 27 jours est de 33 %. Pour le régime sucre + protéines hydrolysées + latex de figuier, le pourcentage de femelles matures parmi
celles sacrifiées à l'âge de 21 jours est de 46 %. Et celui des femelles matures parmi celles sacrifiées à l'âge de 27 jours est de 56 %. Voir photographies
ci-après (reproduction autorisée, article sous licence Open Access).
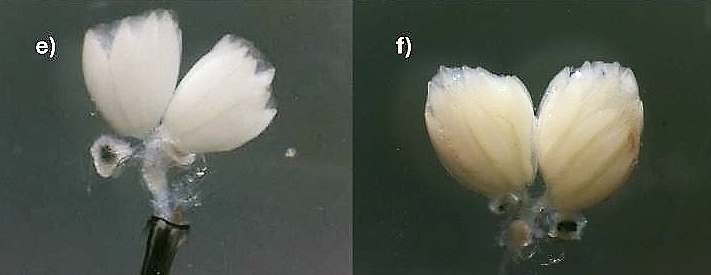
Silba adipata McAlpine : ovaires de femelles matures.
(e = femelle âgée de 21 jours ; f = femelle âgée de 27 jours).
Crédit : DIAZ-DEL-CASTILLO R. et al. (Insects).
DIAZ-DEL-CASTILLO R. et al. indiquent que leurs observations des femelles sous quatre régimes différents permettent de conclure que la maturation des œufs ne se produit pas si la femelle ne consomme pas de protéines
Ils ont ont mené deux autres expérimentations (incidence de l'accès à des figues mûres coupées en deux et incidence de la soumission à des UV-A), réalisées avec le seul régime sucre + protéines hydrolysées et avec pour âges de sacrifice 6, 9, 15 et 21 jours. Ils concluent à l'absence d'incidence de ces deux facteurs sur la durée de maturation des œufs. Je note que lors de ces deux expériences, aucune femelle mature n'a été trouvée dans les lots de femelles sacrifiées avant 15 jours de vie (dans les lots de femelles sacrifiées à 6 et 9 jours de vie, aucune femelle mature n'a été trouvée).
HÉTÉROGÉNÉITÉ OU INCOHÉRENCE DE CERTAINS POURCENTAGES DE FEMELLES MATURES
Il faut souligner que les auteurs indiquent avoir constaté au cours des différentes expériences une variation importante du pourcentage de femelles matures trouvées dans les lots de femelles sacrifiées à un âge donné. Ils fournissent dans la table 1 de l'article le détail des lots de femelles sacrifiées, par expérience et par âge au moment du sacrifice (avec le nombre de femelles constitutif de chacun des lots). Par exemple, on constate dans la table 1 les variations (mais aussi les incohérences) suivantes.
Variations à conditions égales : pour le régime sucre + protéines hydrolysées, les pourcentages de femelles matures parmi les lots de femelles sacrifiées à l'âge de 15 jours sont les suivants : 8 % (test de base du régime, lot de 13 femelles) ; 12,5 % (test incidence UV-A - cas de non soumission aux UV-A, lot de 8 femelles) ; 40 % (test incidence accès figues mûres - cas sans accès aux figues, lot de 10 femelles).
Incohérences : pour ce même régime (test de base), le pourcentage de femelles matures trouvées dans le lot de 12 femelles sacrifiées à l'âge de 27 jours (33 %) est plus faible que celui de 44 % observé pour le lot de 9 femelles sacrifiées à l'âge de 21 jours. Également pour ce régime (test incidence accès figues mûres - cas sans accès aux figues), le pourcentage de femelles matures trouvées dans le lot de 10 femelles sacrifiées à l'âge de 21 jours est nul (0 %), alors qu'il est de 40 % pour le lot de 10 femelles sacrifiées à l'âge de 15 jours.
Pour les auteurs, cela s'explique (et j'en suis d'accord) par le fait que les échantillons sont de taille modeste, la disponibilité des mouches femelles pour les expériences ayant été conditionnée par les émergences des imagos à partir des figues récoltées dans les vergers. Ils indiquent que les pourcentages observés ne fournissent qu'une première estimation du développement sexuel de Silba adipata McAlpine.
CONTRADICTIONS ENTRE LES OBSERVATIONS DE DIAZ-DEL-CASTILLO R. ET AL. ET CELLES DE F. SILVESTRI
DIAZ-DEL-CASTILLO R. et al. soulignent que leurs observations permettent de conclure que la maturation des œufs ne se produit pas si la femelle ne consomme pas de protéines. Alors que F. SILVESTRI a observé la maturation des œufs avec un faible apport de protéines (régime eau + miel, alors que le miel contient moins de 1 % de protéines).
Concernant la durée de maturation des œufs, je note que la
différence n’est pas vraiment importante : une dizaine de jours (soit 9 à
11) pour F. SILVESTRI, de 10 à 15 jours pour DIAZ-DEL-CASTILLO R. et al. (pas de femelles matures trouvées pour l’âge de sacrifice de 9 jours
et, pour l'âge de sacrifice suivant testé, 15 jours, présence de femelles
matures).
La contradiction entre les résultats relatifs à la maturation des œufs provient en fait de la proportion de femelles matures trouvées. Faible proportion pour DIAZ-DEL-CASTILLO R. et al. (40 % pour l’âge de sacrifice de 15 jours, toutes expériences confondues), alors que F. SILVESTRI, sans nous assurer explicitement qu’il a observé une maturation des œufs chez 100 % des femelles, ne nous signale pas qu'il a constaté une faible proportion inattendue des femelles matures.
Pourtant, les deux expérimentations ont été réalisées en conditions de laboratoire. Mais le fait que F. SILVESTRI ne fournisse ni détails sur le mode opératoire, ni informations sur le nombre de femelles disséquées et sur les âges de sacrifice testés, ne permet pas d'essayer d'expliquer les divergences de résultats.
FAIBLE PROPORTION DES FEMELLES MATURES
DIAZ-DEL-CASTILLO R. et al. précisent que, toutes expériences confondues, 40 % des femelles sacrifiées à l'âge de 15 jours sont matures, et que c'est le cas pour 56 % de celles sacrifiées à l'âge de 21 jours. Selon eux, ces proportions relativement faibles de femelles matures suggèrent l'existence de stimuli spécifiques supplémentaires non pris en compte dans leurs études, qui pourraient jouer un rôle essentiel dans la facilitation de la maturation sexuelle.
Pour ma part, je peux rapprocher ces faibles proportions de femelles matures aux âges de 15 et 21 jours de celle que j'ai observée lors de ma campagne de capture d'individus de Silba adipata McAlpine, menée en 2025 sur mon figuier de la variété 'Bellone' : sur 178 femelles capturées avec l'aspirateur à bouche, je n'ai trouvé que 25 femelles matures, soit 14 %. Étant précisé que la période couverte par la campagne de capture, c'est à dire des derniers jours de mai à la fin du mois de juin, couvre amplement la phase d'attaques intenses de Silba adipata McAlpine (phase 1 du modèle d'attaque), d'une durée de 15 jours début juin pour le figuier de la variété 'Bellone'.
La faible proportion des femelles matures (14 % ; 25 individus) n'est pas incohérente par rapport au taux d'attaques de Silba adipata McAlpine très élevé que je constate d'une année à l'autre sur le figuier 'Bellone' (95 % de perte de récolte), si l'on se remémore que le flux quotidien moyen des femelles pondeuses est estimé à 3 sur ce figuier pendant la phase d'attaques intenses de Silba adipata McAlpine (voir chapitre). Les 25 femelles matures capturées représentent ainsi un potentiel de flux de femelles pondeuses de 8 jours, sur les 15 jours de période d'attaques intenses de Silba adipata McAlpine sur le figuier 'Bellone'. Étant précisé que ces femelles matures ont été capturées avec l'aspirateur à bouche sur des points de suintement de latex créés sur le figuier, alors qu'elles n'étaient pas en situation de ponte (car, selon mes observations, une femelle Silba adipata McAlpine accomplissant sa séquence de pontes sur un figuier n'interrompt jamais cette séquence pour s'alimenter ; voir chapitre).
Ainsi, les observations d'une faible proportion de femelles matures réalisées en laboratoire par DIAZ-DEL-CASTILLO R. et al., et in situ par moi-même, pourraient peut-être révéler une absence de fécondité pendant au moins le premier mois de vie (peut-être pour la vie entière ?) pour une partie importante d'une génération donnée de Silba adipata McAlpine. Le pouvoir de nuisance sur les récoltes de figues d'une population d'individus de Silba adipata McAlpine serait alors moins élévé que l'on pourrait le croire...
Cette hypothèse audacieuse est fragile. Il faut réfléchir aux raisons qui pourraient expliquer l'absence de fécondité. Il convient aussi de resituer l'hypothèse dans le contexte du modèle d'attaque en 3 phases observé pour Silba adipata McAlpine. Enfin, il s'agit d'imaginer d'autres procédés de détermination des pourcentages de femelles matures pour en comparer les résultats avec ceux des deux procédés évoqués supra.
Le premier qui vient à l'esprit est l'examen de l'abdomen de toutes les femelles capturées dans les pièges McPhail appâtés avec un liquide alimentaire (pendant la phase des attaques intenses de Silba adipata McAlpine). Mais le principe serait le même que celui de la capture avec l'aspirateur à bouche (c'est à dire captures de femelles attirées par des appâts alimentaires)et les résultats risquent d'être identiques.
Un autre procédé consisterait à marquer d'une couleur donnée 100 imagos femelles issus des émergences obtenues à partir des figues fleurs infestées d'un figuier bifère donné, de les lâcher sur ce figuier, puis de capturer les femelles marquées qui reviendraient sur le figuier. Captures à réaliser seulement après le délai de 15 jours suivant la date du lâcher des femelles, pour celles se livrant à des activités alimentaires, et sans cette contrainte de délai pour les femelles pondeuses. Mais ce procédé est très lourd de mise en œuvre et il est peut-être incertain quant au niveau de retour des femelles marquées sur le figuier choisi.
 Début page Sommaire