Présentation Biologie Mode de vie Infestation Nuisance Moyens de lutte
Accueil > Nuisance > Variabilité des attaques au fil
de la saison et modèle d'attaque.
Auteur : François DROUET.
Photographies : François DROUET.
Tous droits réservés.
Variabilité des attaques dans la saison et modèle d'attaque
Selon le plan suivant : observations générales, répartition des attaques par récolte (2019), modèle du comportement d'attaque, interprétation du comportement d'attaque (hypothèse proposée et hypothèses non retenues).
OBSERVATIONS GÉNÉRALES
OBSERVATIONS DE F. SILVESTRI
F. SILVESTRI est l'auteur d'une magistrale étude de la mouche noire du Figuier. Référence : SILVESTRI F., 1917, Sulla Lonchaea aristella Beck. (Diptera : Lonchaeidae) dannosa alle infiorescenze e fruttescenze del caprifico e del fico, Bollettino del Laboratorio di Zoologia Agraria in Portici, vol.12, pp. 123 -146.
Il mentionne en page 139 que pour le figuier domestique, c'est à dire celui qui porte des figues comestibles, les dégâts les plus importants sont constatés au mois de juillet (dans la région de Naples) sur les jeunes figues immatures. Il indique qu'après le mois de juillet les attaques sur les figues au stade de l'inflorescence (c'est à dire immatures) diminuent fortement, en précisant que celles sur les figues au stade de l'infrutescence (c'est à dire mûres) sont rares. Il ajoute que, dans la région de Naples, en octobre et novembre la variété 'Natalino' (très tardive) est attaquée.
MES OBSERVATIONS GÉNÉRALES
J'ai observé moi aussi une variabilité des intensités des attaques de Silba adipata McAlpine au cours de la saison, pour chacun de mes figuiers. Au cours des saisons 2015 à 2018, j'ai seulement repéré globalement mes périodes de ramassage (sur l'arbre) des figues attaquées. Et j'ai pu constater, pour chacune des variétés, qu'après une période de fort ramassage de figues attaquées assez courte, suivait une longue période de ramassage faible à nul. J'avais remarqué que cette baisse des attaques sur les figues immatures n'était pas liée à une éventuelle disparition de celles-ci en période de figues mûres. En effet, le mode de fructification du Figuier induit la c oexistence sur un arbre donné de nombreuses figues immatures avec les figues mûres, quelle que soit la variété.
D'autre part, j'avais aussi bien noté que mes figuiers (variété bifère 'Grise de la Saint-Jean' et variétés unifères 'Bellone' et 'Col de Dame Noire') ont des périodes de fructification différentes et que, si l'on considère les trois arbres, il existe des figues vertes immatures sans interruption de début mars à fin septembre. Ainsi, ce sont les figues fleurs immatures de la variété 'Grise de la Saint-Jean' qui sont attaquées les premières. Puis c'est le cas pour les figues immatures de la variété unifère 'Bellone' et, en léger recouvrement, les figues immatures de deuxième récolte de la variété 'Grise de la Saint-jean'. Enfin, c'est le tour des figues immatures de la variété unifère semi-tardive 'Col de Dame Noire'. J'avais également conscience de l'existence d'un décalage chronologique entre la détection sur l'arbre des figues infestées et les attaques de celles-ci (pontes) par Silba adipata McAlpine, mais sans pouvoir le chiffrer.
Mes observations des années 2015 à 2018 méritant d'être affinées, j'ai décidé d'observer de façon approfondie la répartition des attaques de Silba adipata McAlpine au fil de la saison 2019 pour les quatre récoltes de figues de mon jardin : variétés 'Grise de la Saint-Jean' (bifère), 'Bellone' (unifère), 'Col de Dame Noire' (unifère). Et j'ai pu établir un calendrier des attaques
à partir de mes relevés détaillés de ramassage (sur les arbres et non au sol) des figues infestées, en élaborant une méthode de détermination de la date d'attaque d'une figue par Silba adipata McAlpine, à partir de la date d'apparition des trous de sortie de larve et de la taille des larves.

Silba adipata McAlpine pondant dans l'ostiole d'une figue immature.
RÉPARTITION DES ATTAQUES PAR RÉCOLTE (SAISON 2019)
FIGUIER 'GRISE DE LA SAINT-JEAN' (FIGUES FLEURS)
Pour la première récolte (figues fleurs) du figuier de la variété 'Grise de la Saint-Jean', on peut résumer la répartition des attaques de Silba adipata McAlpine au fil de la saison 2019 de la façon suivante : L'essentiel des attaques (75 %) se concentre sur 17 jours (première quinzaine d'avril). Puis, on constate (concernant 25 % des attaques) une période de deux mois et demi (deuxième quinzaine d'avril et mois de mai et juin) comportant de très faibles attaques et des séquences d'absence d'attaques de quelques jours. Suivie d'une absence totale d'attaques pendant 8 jours (jusqu'au 9 juillet, terme de la récolte). Voir détails au chapitre relatif à l'étude des attaques de la saison 2019.
FIGUIER 'GRISE DE LA SAINT-JEAN' (DEUXIÈME RÉCOLTE)
Pour la deuxième récolte du figuier de la variété 'Grise de la Saint-Jean', on peut résumer la répartition des attaques de Silba adipata McAlpine au fil de la saison 2019 de la façon suivante. L'essentiel des attaques (88 %) se concentre sur 20 jours (dernière décade de juin et première décade de juillet), sachant que 75 % des attaques ont lieu les 10 premiers jours. Puis, on constate (concernant 12 % des attaques) une période de 1 mois (deux dernières décades de juillet et première décade d'août) comportant de faibles attaques et des séquences d'absence d'attaques de plusieurs jours. Suivie d'une absence totale d'attaques pendant 1 mois (jusqu'au 19 septembre, terme de la récolte). Voir détails au chapitre relatif à l'étude des attaques de la saison 2019.
FIGUIER UNIFÈRE 'BELLONE'
Pour le figuier de la variété unifère 'Bellone', on peut résumer la répartition des attaques de Silba adipata McAlpine au fil de la saison 2019 de la façon suivante. L'essentiel des attaques (90 %) se concentre sur 12 jours (deuxième quinzaine de juin). Puis, on constate (concernant 10 % des attaques) une période de 5 semaines (mois de juillet et première semaine d'août) comportant de faibles attaques. Suivie d'une absence totale d'attaques pendant 3 semaines (jusqu'à la fin août, terme de la récolte). Voir détails au chapitre relatif à l'étude des attaques de la saison 2019.
FIGUIER UNIFÈRE 'COL DE DAME NOIRE'
Pour le figuier de la variété unifère 'Col de Dame Noire', on peut résumer la répartition des attaques de Silba adipata McAlpine au fil de la saison 2019 de la façon suivante. L'essentiel des attaques (97 %) se concentre sur 23 jours (deuxième quinzaine de juillet et première semaine d'août). Puis, on constate (concernant 3 % des attaques) une période
de 3 semaines (trois dernières semaines d'août) comportant de très faibles attaques. Suivie d'une absence totale d'attaques pendant 6 semaines (le mois de septembre,
puis jusqu'au 11 octobre, terme de la récolte). Voir détails au chapitre relatif à l'étude des attaques de la saison 2019.

Silba adipata McAlpine pondant sous une écaille ostiolaire d'une figue immature.
MODÈLE DU COMPORTEMENT D'ATTAQUE
UN MODÈLE EN TROIS PHASES
On constate une variabilité des attaques de Silba adipata McAlpine au fil de la saison pour chacune des quatre récoltes qui ont fait l'objet des études réalisées lors de la saison 2019. La variabilité des attaques est différente d'une récolte à une autre. Elle est spécifique à un figuier donné (et à celle des deux récoltes considérée, dans le cas de la variété bifère). Mais le comportement d'attaque de Silba adipata McAlpine qui ressort des quatre études répond à un même modèle général. Celui-ci se traduit par l'existence de 3 phases.
Phase 1 : attaques intenses concentrées sur une courte durée.
Phase 2 : attaques de très faible niveau. Durant cette phase, le nombre d'attaques est toujours nettement inférieur au nombre de figues immatures de taille requise pour l'attaque présentes sur l'arbre. Et des femelles de Silba adipata McAlpine fréquentent le figuier pour s'y nourrir.
Phase 3 : absence totale d'attaques. Il faut souligner que pendant cette phase, il existe encore sur l'arbre des figues immatures de taille requise pour l'attaque, et que des femelles de Silba adipata McAlpine sont présentes de façon régulière sur celui-ci pour s'y nourrir.
DÉCLINAISONS DU MODÈLE
D'une récolte à l'autre, parmi les quatre étudiées en 2019, le modèle général du comportement d'attaque de Silba adipata McAlpine se décline avec des différences parfois importantes au niveau de chacune des trois phases.
La phase 1 peut varier de 12 à 23 jours, et concentrer de 75 % à 97 % des attaques de la saison. Ainsi, pour la phase 1, 'Grise de la Saint-Jean', figues leurs : 75 % des attaques en 17 jours, deuxième récolte : 88 % en 20 jours ; 'Bellone' : 90 % en 12 jours ; 'Col de Dame Noire' : 97 % en 23 jours.
La phase 2 dure de 3 à 5 semaines pour 'Grise de la Saint-Jean' (deuxième récolte), 'Bellone' et 'Col de Dame Noire', mais s'étend sur 2,5 mois pour 'Grise de la Saint-Jean', figues fleurs.
La phase 3 varie de 3 à 6 semaines pour 'Grise de la Saint-Jean' (deuxième récolte), 'Bellone' et 'Col de Dame Noire', mais dure seulement 8 jours pour 'Grise de la Saint-Jean', figues fleurs.
Note : les caractéristiques de la phase d'attaques intenses font l'objet d'un chapitre spécifique.
UNICITÉ DE LA PHASE D'ATTAQUES INTENSES DANS L'ANNÉE
Il découle du modèle d'attaque de Silba adipata McAlpine un principe qu'il est très important de prendre en compte pour la lutte contre ce ravageur : pour un figuier unifère donné, il n’existe qu’une fois dans l’année une phase d’attaques intenses, bien que plusieurs générations successives de mouche noires fréquentent celui-ci. La phase d'attaques intenses n'est associée qu'à la première génération de l'année (celles des femelles issues des figues fleurs des figuiers bifères et des profichi des caprifiguiers), et non à chacune des générations successives.
Et il faut noter que « pour un figuier donné » équivaut à « pour un verger donné », le principe s"appliquant à chacun des figuiers du verger. Même si le verger est multi-variétal, car la variété peut influer sur le positionnement chronologique de la phase d’attaques intenses dans la saison (qui peut être différent d’une variété à une autre), mais pas sur le nombre d’occurrences de cette phase, qui reste égal à 1 pour chacun des figuiers, donc pour chacune des variétés composant le verger.
Pour les figuiers bifères, le principe précité joue pour la deuxième récolte, sachant que pour les figues fleurs il existe aussi une phase d'attaques intenses unique (qui est le fait des femelles de la dernière génération de l'année précédente, qui sont sorties de leur diapause hivernale).

Silba adipata McAlpine pondant sous une écaille ostiolaire d'une figue immature.
INTERPRÉTATION DU COMPORTEMENT D'ATTAQUE : HYPOTHÈSE PROPOSÉE
Je n'ai pas trouvé d'éléments évoquant le modèle d'attaque en 3 phases de Silba adipata McAlpine dans la littérature spécialisée que j'ai pu consulter jusqu'à présent (2026). Pour interprérter les phases du modèle d'attaque, j'ai examiné diverses hypothèses liées aux figues immatures ou aux conditions climatiques (sans prétendre à l'hexaustivité, bien entendu...). Sur la base de mes propres observations, je n'en ai retenu aucune, parfois après débat avec les autres contributeurs principaux au présent site (voir ci-après, dans le dernier sous-chapitre, l'exposé des hypothèses et les raisons de leur irrecevabilité).
En 2025, à la faveur de nos études de l'évolution sexuelle des femelles (notamment la durée de la maturation des œufs), de l'évolution du flux des femelles matures pendant la phase d'attaques intenses et du dénombrement des œufs portés par la femelle mature, une nouvelle hypothèse s'est progressivement dégagée.
HYPOTHÈSE.PROPOSÉE
La variabilité des attaques au cours de la saison de Silba adipata McAlpine (modèle d'attaque en 3 phases) s'expliquerait par une faible proportion des femelles atteignant la maturité et un taux faible à nul de renouvellement des œufs après la ponte. Étant souligné que cette hypothèse est fragile et requiert des études complémentaires pour une éventuelle consolidation.
La faible proportion de femelles matures pourrait expliquer le modèle d’attaque en 3 phases : les femelles ayant réussi à atteindre le stade de la maturité attaqueraient les figues immatures pendant la phase 1 d’attaques intenses, les femelles matures seraient beaucoup moins nombreuses pendant la phase 2 et il n'y aurait plus de femelles matures pendant la phase 3. La raison de la faible proportion de femelles matures serait un régime alimentaire insuffisamment riche en protéines au regard d'un besoin spécifique d'apport élevé de celles-ci chez Silba adipata McAlpine. Il conviendrait malgré tout de réfléchir aux autres raisons qui pourraient expliquer l'absence de fécondité chez une grande partie des femelles.
La question du renouvellement du quantum de 20 à 28 œufs porté par les femelles matures, tel que nous l'avons observé (voir chapitre) se pose alors : lorsqu’elle a épuisé par la ponte son
quantum initial d’œufs, la femelle Silba adipata McAlpine est-elle vraiment en capacité de le renouveler (chaîne des ovocytes en cours de développement dans l’ovariole) ? Ce
renouvellement (maturation d’un nouveau quantum d’œufs) pourrait-il ne pas
démarrer, ou être bloqué alors qu’il est en cours, du fait d’un régime
alimentaire inadéquat (ou pour une autre raison) ?
En tout état de cause, l’état d’immaturité des femelles (initial par absence
de maturation des œufs, ou à un âge plus avancé par non renouvellement du quantum
des œufs pondus) pourrait expliquer nos observations habituelles de femelles
présentes sur le figuier (pour s’y nourrir) qui n’attaquent pas les figues
immatures de diamètre largement supérieur à 1,1 cm (taille minimale des figues attaquées que nous avons observée).
OBSERVATIONS ÉTAYANT L'HYPOTHÈSE PROPOSÉE
L'hypothèse est basée principalement sur l'étude du flux des femelles matures au cours de la phase d'attaques intenses de Silba adipata McAlpine sur un figuier unifère de la variété 'Bellone', réalisée en 2025 (voir chapitre). Celle-ci fait apparaître une faible proportion de femelles matures parmi les femelles capturées : sur 178 femelles capturées avec l'aspirateur à bouche, je n'ai trouvé que 25 femelles matures, soit 14 %. Étant précisé que la période couverte par la campagne de captures, c'est à dire des derniers jours de mai à la fin du mois de juin, couvre amplement la phase d'attaques intenses de Silba adipata McAlpine (phase 1 du modèle d'attaque), d'une durée de 12 jours début juin pour le figuier de la variété 'Bellone'.
La faible proportion des femelles matures (14 % ; 25 individus) n'est pas incohérente par rapport au taux d'attaques de Silba adipata McAlpine très élevé que je constate d'une année à l'autre sur le figuier 'Bellone' (95 % de perte de récolte), si l'on se remémore que le flux quotidien moyen des femelles pondeuses est estimé à 3 sur ce figuier pendant la phase d'attaques intenses de Silba adipata McAlpine (voir chapitre). Les 25 femelles matures capturées représentent ainsi un potentiel de flux de femelles pondeuses de 8 jours, sur les 12 jours de période d'attaques intenses de Silba adipata McAlpine sur le figuier 'Bellone'. Étant précisé que ces femelles matures ont été capturées avec l'aspirateur à bouche sur des points de suintement de latex créés sur le figuier, alors qu'elles n'étaient pas en situation de ponte (car, selon mes observations, une femelle Silba adipata McAlpine accomplissant sa séquence de pontes sur un figuier n'interrompt jamais cette séquence pour s'alimenter ; voir chapitre).
Nous avons connaissance d'une autre étude relative au taux des femelles matures parmi des femelles capturées qui pourrait conforter également l'hypothèse proposée. Un correspondant a fait part à l'un des contributeurs principaux au présent site d'une recherche des femelles matures parmi les femelles de l'espèce Silba adipata McAlpine capturées dans des pièges avec appât alimentaire, réalisée en 2025 (communication personnelle). Sur un total de 128 femelles disséquées, se trouvaient 8 femelles matures (6 %) et 120 femelles immatures (94 %).
Les femelles ont été capturées avec des pièges à appât
alimentaire, alors que nous les avons capturées avec l’aspirateur à bouche et
des points de suintement de latex. Le résultat est similaire par le constat
d’une faible proportion de femelles matures, mais les proportions sont
différentes (14 % pour notre étude, 6 % pour l'étude mentionnée par le correspondant).
Le fait que
nous ayons trouvé 2,33 fois plus de femelles matures ne me
semble pas à imputer à la technique de capture (piège ou aspirateur à bouche),
mais plutôt à la période de capture (phase d’attaques intenses pour nous, alors
que, c’est à vérifier, cela ne semble pas être le cas pour l'autre étude).
On pourrait
suspecter aussi l’attractivité de l’appât (latex pour nous, appâts alimentaires autres pour
la seconde étude) : le latex aurait attiré plus de femelles matures. Mais
il me semble (à confirmer) que la majorité des femelles matures que nous avons
capturées l’a été pendant la phase d’attaques intenses (d’une durée de 12
jours), alors que la capture de femelles matures est plus faible, voire
nulle, dans les quelques jours situés avant et après la phase
d’attaques intenses.
Les expérimentations relatives à la durée de la maturation des œufs de Silba adipata McAlpine réalisées en 2025 par une équipe de chercheurs mexicains pourraient également conforter l'hypothèse que nous proposons. Référence : DIAZ-DEL-CASTILLO R., CÓRDOVA-GARCIA G., PÉREZ-STAPLES D., BIRKE A., WILLIAMS T., LASA R., 2025, Sexual Development of Silba adipata (Diptera: Lonchaeidae): Effects of Diet, Ultraviolet Light and Fig Latex, Insects 16, no. 5: 495.
Les auteurs indiquent que, toutes expériences confondues, 40 % des femelles sacrifiées à l'âge de 15 jours sont matures et que c'est le cas pour 56 % de celles sacrifiées à l'âge de 21 jours. Selon eux, ces proportions relativement faibles de femelles matures suggèrent l'existence de stimuli spécifiques supplémentaires non pris en compte dans leurs études, qui pourraient jouer un rôle essentiel dans la facilitation de la maturation sexuelle.
Si les observations d’une faible proportion de femelles réalisant une maturation des œufs chez Silba adipata McAlpine se confirment, les taux de femelles matures trouvées par DIAZ-DEL-CASTILLO R. et al. constituent un résultat exceptionnellement haut, dû vraisemblablement aux protéines hydrolysées qu'ils indiquent avoir introduites dans les régimes alimentaires, celles-ci stimulant fortement la maturation des œufs en laboratoire, mais n'étant pas accessibles in situ. Le résultat ressenti par DIAZ-DEL-CASTILLO R. et al. comme anormalement bas serait alors un résultat artificiellement haut, mais témoignant néanmoins d'une difficulté structurelle des femelles de Silba adipata McAlpine à atteindre le stade de la maturité.
Ainsi, les observations d'une faible proportion de femelles matures réalisées en laboratoire par DIAZ-DEL-CASTILLO R. et al., et à partir de captures in situ par moi-même et par le correspondant d'un membre de notre équipe, pourraient peut-être révéler une absence de fécondité chez une partie importante de chacune des générations de Silba adipata McAlpine. Le pouvoir de nuisance sur les récoltes de figues d'une population d'individus de Silba adipata McAlpine serait alors moins élévé que ce que l'on pourrait croire... Même si la faible proportion de femelles matures reste suffisante pour engendrer des pertes de récolte considérables.
Il serait peut-être utile d'imaginer d'autres procédés de détermination des pourcentages de femelles matures pour en comparer les résultats avec ceux des deux procédés mentionnés supra (capture avec aspirateur à bouche sur points de suintement de latex ; capture par pièges avec appât alimentaire).
Un autre procédé consisterait à marquer d'une couleur donnée 100 imagos femelles issus des émergences obtenues à partir des figues fleurs infestées d'un figuier bifère donné, de les lâcher sur ce figuier, puis de capturer les femelles marquées qui reviendraient sur le figuier. Captures à réaliser seulement après le délai de 15 jours suivant la date
du lâcher des femelles, pour celles se livrant à des activités alimentaires, et sans cette contrainte de délai pour les femelles pondeuses. Mais ce procédé
est très lourd de mise en œuvre et il est peut-être incertain quant au niveau de retour des femelles marquées sur le figuier choisi.
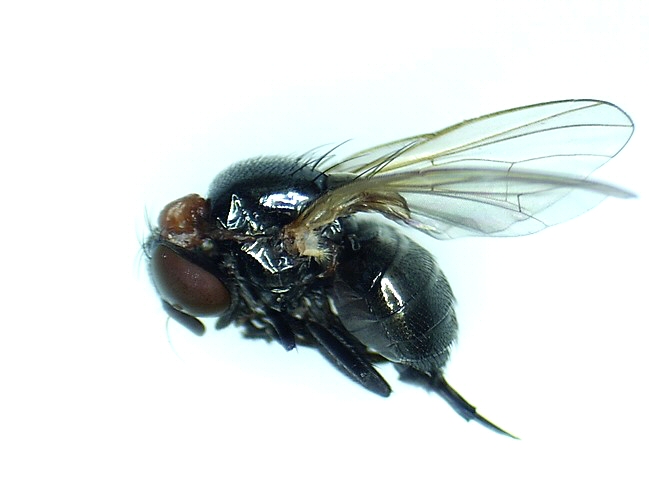
Silba adipata McAlpine : femelle mature capturée avec l'aspirateur à bouche.
(noter la forme de l'abdomen).
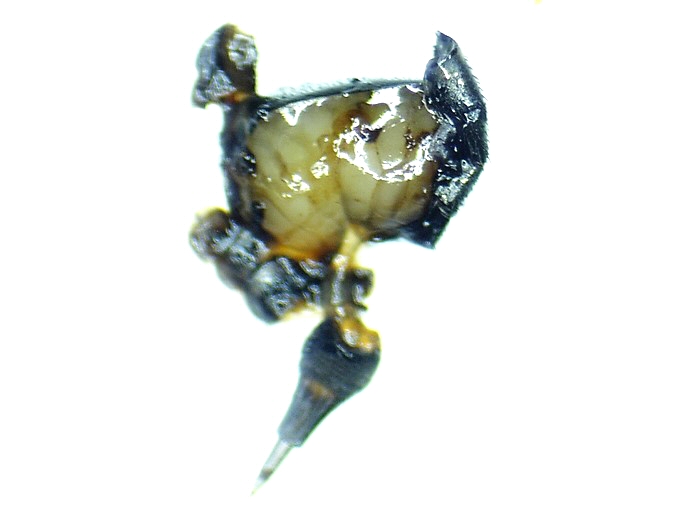
Silba adipata McAlpine : ovaires de la femelle mature ci-dessus.
(voir stades d'évolution sexuelle de la femelle).
INTERPRÉTATION DU COMPORTEMENT D'ATTAQUE : HYPOTHÈSES NON RETENUES
HYPOTHÈSES LIÉES AUX FIGUES IMMATURES
1. La phase 2 du modèle (période d'attaques très faibles) ne s'explique pas par un nombre insuffisant de figues immatures (dures et vertes) ayant atteint la taille critique d'attaque de Silba adipata McAlpine (diamètre 1,1 cm). J'ai pu noter, en effet, lors de chacun des relevés de pièges de la totalité de la phase 2 que celles-ci étaient
nombreuses sur l'arbre, alors que le nombre des attaques stagnait à une moyenne très faible. Les attaques ont donc été quotidiennement loin de saturer le nombre de figues immatures de taille suffisante pour être attaquées.
2. On pourrait supposer que l'existence de la phase 2 du modèle s'explique par une taille importante des figues immatures (diamètre supérieur à 3 cm). Il s’agit d’une piste à examiner plus
profondément, mais elle ne me paraît pas devoir être retenue en première approche, car j'ai observé une majorité de figues immatures de diamètre nettement inférieur à 3 cm sur chacun des figuiers au cours de la phase 2 et pour une partie de la phase 3 (absence totale d'attaques). Ce n'est que dans dernière partie de la phase 3 que les figues immatures de diamètre supérieur à 3 cm deviennent nombreuses et cela résulte de l'absence d'attaques de Silba adipata McAlpine.
3. La phase 3 (absence totale d'attaques de Silba adipata McAlpine dans la dernière partie de la saison) ne s'explique pas par l'effet des pièges posés sur les figuiers. Il s'agit d'un phénomène que j'ai observé régulièrement, y compris les années au cours desquelles aucun piège n'a été posé sur les figuiers. Selon mes observations basées sur les 4 récoltes portées par les 3 figuiers, la phase 3 ne s'explique pas non plus
par l'absence de figues immatures dures et vertes sur le figuier. Par exemple, pour le fichier 'Bellone', en 2019 la dernière figue immature a été attaquée le 6 août. Or, j'ai noté lors du relevé des pièges du 16 août que l'arbre portait encore de nombreuses figues immatures ayant dépassé depuis longtemps la taille critique d'attaque de Silba adipata McAlpine. Et la présence de figues immatures sur l'arbre a persisté jusqu'au 22 août.
4. Une autre piste d'explication du comportement d'attaque de Silba adipata McAlpine pourrait être l’interaction éventuelle entre les attractivités successives des récoltes, qui déporterait les mouches d’un figuier vers l’autre, le déport vers le figuier suivant (attaques intenses) se réalisant au bénéfice du figuier précédent (moins d’attaques ou absence d’attaques). Mais quel serait le critère permettant de définir l'attractivité d'un figuier ? Il s'agirait de l'attractivité pour les femelles pondeuses et non pour les mouches consommatrices, car je n'ai pas observé de baisse de la population des individus de Silba adipata McAlpine sur chacun des figuiers au cours de la saison.
Sachant que la présence de figues immatures et l'atteinte par celles-ci de la taille minimale requise pour la ponte sont sans effet sur l'attractivité du figuier pour les femelles pondeuses pendant les phases 2 et 3, on peut supputer qu'il en est de même pour la phase 1 (attaques intenses) et avancer l'hypothèse que c'est le nombre de figues immatures présentes simultanément sur le figuier qui déclencherait ces attaques intenses, du fait de la concentration des effluves de latex générés (effet de masse). Il se peut d'ailleurs que ce soit le nombre de figues immatures ayant atteint un niveau d'évolution qui leur permet de diffuser des effluves de latex au-dessus d'un seuil d'attractivité individuel donné. Cette piste est à approfondir, mais en l'état actuel de nos observations elle ne peut pas être retenue.
Note : je mentionne les effluves de latex car j'ai observé que la femelle pondeuse de Silba adipata McAlpine est attirée par les figues immatures vertes et dures (gorgées de latex), même attaquées récemment (pluralité de pontes dans une même figue assez fréquente), et pas du tout par les figues mûres (dans lesquelles le sucre a remplacé le latex), ni par les figues attaquées qui se sont amollies et ont rougi (dont l'état physiologique est proche de celui des figues mûres).
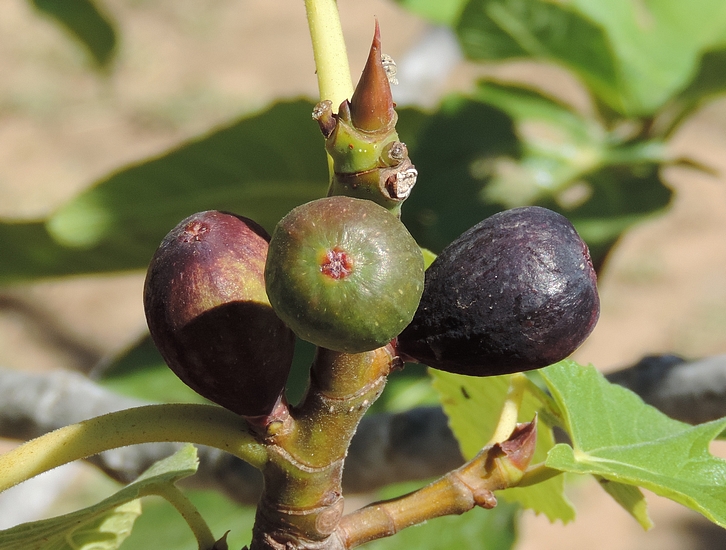
Figues immatures attaquées par Silba adipata McAlpine : stades d'évolution différents.
HYPOTHÈSES LIÉES AUX CONDITIONS CLIMATIQUES
1. La variabilité des attaques sur une même récolte d'un même figuier paraît indépendante de l'évolution des températures et de l'humidité au cours de la saison.
Dans ma région (Toulon), comme dans toutes les régions méditerranéennes, les températures du mois d’avril sont nettement moins élevées que celles du mois de juin, elles-mêmes moins élevées que celles du mois de juillet. Et, dans ces régions, l’humidité de l’air diminue considérablement entre avril et juillet. Or, l’essentiel des attaques de Silba adipata McAlpine (phase 1 d'attaques intenses) se produit en avril pour les figues fleurs ‘Grise de la Saint-Jean’, en juin pour le figuier ‘Bellone’ et pour la deuxième récolte ‘Grise de la Saint-Jean’, en juillet pour le figuier ‘Col de Dame Noire’. Et la phase 1 est dans tous les cas suivie par une phase 2 et une phase 3. En conséquence, on peut déduire que les conditions climatiques de chaleur et d’humidité ne sont pas à l’origine de la variabilité des attaques de Silba adipata McAlpine pour une même récolte
sur un même figuier.
2. Dans le même référentiel des conditions climatiques, on pourrait invoquer comme origine de la baisse des pontes (phase 2) ou de l'arrêt de celles-ci (phase 3), l'atteinte de conditions extrêmes de températures et d'humidité qui ne joueraient pas sur la faculté de pondre, mais qui entraîneraient la mort de la plupart des individus de Silba adipata Mcalpine. Ce phénomène se constate à la mi-juillet/début août pour Ceratitis capitata Wiedemann dans les vergers commerciaux de figuiers de la région d'Albatera, en Espagne - communication d'Alain COSTA, ingénieur agricole consultant et producteur de figues 'Colar de Albatera'.
Cette hypothèse ne me paraît pas plausible car j'observe pendant les phases 2 et 3 sur chacun de mes figuiers la présence du nombre d'individus de Silba adipata MacAlpine fréquentant habituellement celui-ci. D'autre part, cela conduirait à transposer un cas d'occurrence unique à un moment précis de la saison (impossibilité de survie de Ceratitis capitata Wiedemann) sur une situation (variabilité des attaques de Silba adipata McAlpine sur la même récolte d’un même figuier) se produisant de façon uniforme tout au long de la saison sur les 4 récoltes de 3 variétés de figuiers. Les conditions extrêmes de températures et d’humidité devraient s’appliquer uniformément à toutes les récoltes de la saison pour entrer dans l’explication d’un comportement d’attaque (en 3 phases) qui est uniforme pour les 4 récoltes observées et qui se reproduit tous les ans. Ce qui ne paraît pas possible, compte tenu de la différence d’époque d’occurrence de 3 récoltes sur 4.
 Début page Sommaire